シグナルが動くまでは静かなチューブ
リアルタイムPCRアッセイは、セットアップ時には完璧に制御されているように見えることがあります。
プライマーは存在し、ポリメラーゼは活性を持ち、標的配列は理論上特異的であり、装置は蛍光を記録する準備ができています。
しかし、ランの終盤近くになって、ノーテンプレートコントロール(NTC)が上昇し始めます。
チューブには何も添加されておらず、病原体も存在しません。それにもかかわらず、曲線は増幅のように見えます。
これこそがプライマーダイマーの診断上の危険性です。つまり、意図した標的を生成することなく、反応が証拠を作り出してしまう可能性があるのです。
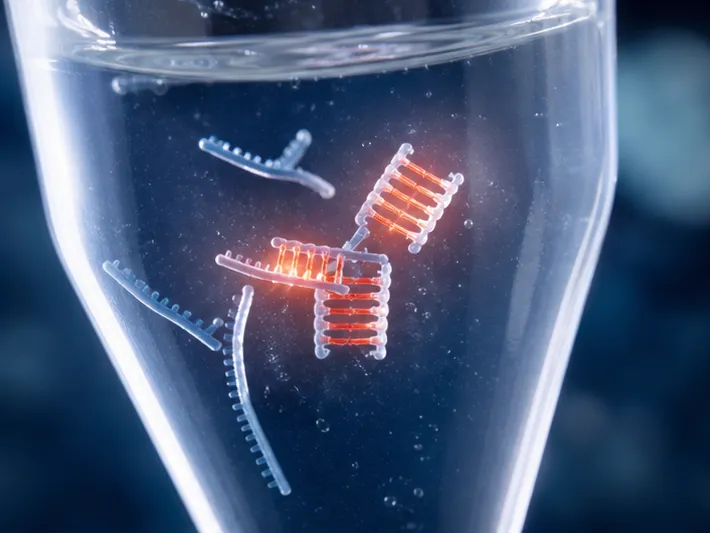
プライマーダイマーとは、プライマー同士が一時的に結合し、DNAポリメラーゼによって伸長されることで形成される、短い非特異的な二本鎖産物です。研究においては単なる不都合かもしれませんが、診断においては、化学、解釈、そして臨床的リスクを巻き込むシステムレベルの障害となり得ます。
偽シグナルの背後にある分子イベント
問題は3′末端から始まる
プライマーダイマーは、単に同じチューブ内に2種類のプライマーが存在することによって引き起こされるランダムな事故ではありません。
決定的な引き金となるのは、プライマーの3′末端における相補性です。
フォワードプライマーとリバースプライマーが3′末端でいくつかの相補的な塩基を共有している場合、それらは互いに一時的にアニーリングすることがあります。アライメントが十分に安定していれば、ポリメラーゼは一方のプライマーを他方のテンプレートとして扱います。
短い二本鎖が、伸長可能な基質となるのです。
一度伸長されると、その初期産物は後のサイクルでテンプレートとして機能します。その後、そのアーティファクトは正規のアンプリコンと同じ指数関数的な論理に従います。
| 分子的な特徴 | 何が起こるか |
|---|---|
| 3′相補性 | プライマー同士がアニーリングする |
| ポリメラーゼのアクセス | 一方のプライマーが他方を起点に伸長する |
| 最初のダイマー産物 | 短い二本鎖アーティファクトが生成される |
| 後続のサイクル | アーティファクトが指数関数的に増幅される |
配列のコンテキストや反応条件にもよりますが、3′末端で3塩基以上の相補性があれば、この一連のイベントを引き起こすのに十分な場合があります。
高いプライマー濃度や高いGC含量は相互作用の機会を増やす可能性がありますが、それら自体が根本的な原因ではありません。脆弱な3′アライメントがなければ、これらの要因だけでプライマーダイマーが確実に生成されることはありません。
最初のリスクはサイクリング前に発生する可能性がある
問題が始まるのは、必ずしもサーマルサイクラーの中ではありません。
反応セットアップ中、混合液は室温で数分間放置されることがあります。従来のポリメラーゼはこの期間中、部分的な活性を保持している場合があります。通常であれば消失するはずの一時的なプライマー間の相互作用が、最初の変性ステップの前に伸長されてしまう可能性があります。
その初期伸長が重要です。
反応は、誤ったテンプレートに対して実質的に「先回り」をしてしまっているのです。後続のサイクルでは、アーティファクトを再度生成する必要はなく、ただそれをコピーするだけで済みます。
これが、アッセイの物理的なワークフローが最終的なサイクリングプロトコルと同じくらい重要である理由です。周囲温度での時間、試薬の添加順序、そして酵素の化学特性はすべて、最終的なシグナルに影響を与え得ます。
小さなアーティファクトがアッセイ性能をどう変えるか
インターカレート色素は違いを判別できない
SYBR Greenや関連するインターカレート色素は、二本鎖DNAに反応します。
それらは、そのDNAが意図したアンプリコンなのか、短いプライマーダイマーなのかを判別できません。アーティファクトが十分な濃度に達すると、蛍光を発し、見かけ上の増幅曲線が生成される可能性があります。
装置は蛍光を報告し、分析者が生物学的な意味付けを行います。
そのギャップこそが、偽陽性が入り込む場所です。
融解曲線(メルトカーブ)解析は、アーティファクトの方が融解温度が低いことが多いため、プライマーダイマーと意図した産物を区別できる場合があります。しかし、これは修正的な解釈ステップであり、クリーンなアッセイ設計の代わりにはなりません。主観的な曲線解釈に依存する診断ワークフローは、回避可能な不確実性を伴います。
試薬の枯渇がCt値を上昇させる
プライマーダイマーは、限られたリソースを巡って意図した標的と競合します:
- プライマー
- dNTPs
- DNAポリメラーゼ
- マグネシウムイオン
- 指数増幅期における反応時間
ダイマーが目に見える偽陽性シグナルを生成しない場合であっても、標的の増幅を弱めるのに十分な量の試薬を消費してしまう可能性があります。
その結果、Ct値の上昇、増幅効率の低下、ダイナミックレンジの狭小化が生じる可能性があります。この影響は、標的コピー数がわずかしか存在しない検出限界付近で特に重要になります。
標的濃度が高い場合、意図したアンプリコンがアーティファクトを圧倒する可能性があります。標的濃度が低い場合、アーティファクトが不釣り合いな優位性を得る可能性があります。
マルチプレックス反応はさらなるリスク層を加える
マルチプレックスqPCRでは、複数のプライマーペアが同じ反応環境を共有します。
これにより、追加の可能性が生じます:
- プライマー単独での自己ダイマー
- 同じ向きのプライマー間でのホモダイマー
- 異なるアッセイ標的間でのクロスダイマー
- ポリメラーゼおよびdNTPsの競合
- チャンネル間での蛍光解釈エラー
シングルプレックス反応で良好に機能するプライマーペアが、マルチプレックスパネルに導入されると異なる挙動を示すことがあります。アッセイはもはや独立した反応の集合体ではなく、一つの化学システムを共有する相互作用する配列のネットワークとなります。
そのシステムは全体として評価されなければなりません。
プライマーダイマーが発生しやすくなる条件
プライマー濃度
約0.5 µMを超えるプライマー濃度は、ランダムな衝突の頻度を高め、弱い相互作用を安定化させる可能性があります。
最高濃度が自動的に最も感度の高い選択肢となるわけではありません。プライマーを増やすと標的開始の生の速度は上がるかもしれませんが、バックグラウンド増幅も増加させる可能性があります。
実用的な開始点は各プライマー約0.2 µMであり、その後、Ct値、効率、非特異的シグナルに基づいて滴定を制御します。
マグネシウム濃度
マグネシウムイオンはDNA二本鎖を安定させ、ポリメラーゼ活性をサポートします。
マグネシウムが少なすぎると標的増幅が損なわれる可能性があります。多すぎると、不完全なプライマー相互作用を安定させ、非特異的産物を促進する可能性があります。
したがって、適切な濃度は固定された普遍的な値ではなく、バランスの問題です。マグネシウムは、効率的かつ再現性のある標的増幅を維持できる最低レベルまで減らすべきです。
二次構造
プライマーは、標的に遭遇する前に自分自身と相互作用する可能性があります。
ヘアピンや自己ダイマーは試薬の容量を消費し、より大きな非特異的産物の種となる構造を作り出す可能性があります。これらのリスクは、主要な設計レビューが標的結合のみに焦点を当てている場合、見落とされがちです。
完全な設計評価では、以下を検討する必要があります:
- フォワードプライマーの自己相補性
- リバースプライマーの自己相補性
- フォワード/リバース間のクロス相補性
- 3′末端の相互作用
- ヘアピンの安定性
- マルチプレックスパネル内のすべてのプライマーペア間の相互作用
プライマーダイマーを防ぐための階層的戦略
単一の介入ですべてのプライマーダイマー問題を解決できるものはありません。信頼性の高い診断開発には、いくつかの制御層が使用されます。
1. 実際に必要な反応のためにプライマーを設計する
プライマー設計は、標的配列だけでなく、意図した臨床的および分析的な用途から始めるべきです。
堅牢な初期スクリーニングには通常、以下が含まれます:
- 15〜30塩基のプライマー長
- 約2°C以内のフォワードおよびリバースのTm値
- 適度なGC含量
- 最小限の3′クロス相補性
- 最小限の自己ダイマーおよびヘアピン形成
- 回避可能な3′末端チミジンを含まない
- 3′末端に不要なGCクランプを設けない
- 関連するバリアントカバレッジを維持するアンプリコン配置
設計ソフトウェアは候補となる相互作用を特定できますが、ソフトウェアの出力には実験的な検証が必要です。熱力学的に最も魅力的なプライマーペアであっても、バリアント検出を損なったり、難しいアンプリコンを作成したりする場合は、臨床的に最も有用とは限りません。
2. ホットスタートポリメラーゼを使用する
ホットスタートポリメラーゼは、反応セットアップ中に不活性、あるいは実質的に活性が低い状態を維持します。
それらは、最初の変性または活性化ステップの後にのみ完全に活性化されます。これにより、室温で形成された一時的なプライマーペアが安定したアーティファクトへと伸長されるのを防ぎます。
ホットスタート化学は、以下の場合に特に価値があります:
- 反応を手動で組み立てる場合
- 多くのサンプルを同時に準備する場合
- セットアップ期間が長くなる場合
- プライマー濃度を比較的高く維持する必要がある場合
- アッセイが低コピー数の核酸を標的とする場合
- マルチプレックスの特異性が重要な場合
抗体ベースおよび化学修飾されたホットスタート酵素は一般的なアプローチです。その価値はプライマーダイマーの低減にとどまらず、ワークフローの最も脆弱な段階における非特異的増幅の制御も改善します。
3. 増幅とシグナル生成を分離する
配列特異的プローブは、第2の認識要件を追加します。
TaqManスタイルのプローブのような加水分解プローブは、蛍光シグナルが生成される前に意図したアンプリコンに結合する必要があります。プライマーダイマーは依然として存在する可能性がありますが、プローブ結合配列を欠いていれば、検出システムからはほとんど見えないままです。
これは強力な設計原則です:
増幅は不完全であっても、そのすべての不完全さが陽性結果として見えるわけではない。
プローブベースの検出は試薬コストと開発の複雑さを増加させます。また、プローブ設計、蛍光色素の互換性、マルチプレックスチャンネルの性能に注意を払う必要があります。偽陽性が重大な結果をもたらす診断アッセイでは、その追加された特異性は投資に見合う価値があることが多いです。
4. すべてのランにコントロールを組み込む
コントロールは後付けではなく、アッセイアーキテクチャの一部であるべきです。
最低限、試薬の汚染やバックグラウンドの二量化を監視するために、ノーテンプレートコントロールを含めてください。より要求の厳しいワークフローでは、以下も検討してください:
- 標的回収のためのポジティブコントロール
- プロセス監視のための抽出コントロール
- 阻害を確認するための内部増幅コントロール
- 効率と直線性確認のための段階希釈
- 検出限界付近の低コピー数サンプルの反復
- インターカレート色素を使用する場合の融解曲線または産物解析
陰性のままのノーテンプレートコントロールは、プライマーダイマーが存在しないという証明ではありません。それは、それらの条件下で報告しきい値を超えなかったという証拠に過ぎません。
リスクに応じた緩和戦略の適合
アッセイによって、必要な保護レベルは異なります。
| 主なアッセイ目的 | 推奨される戦略 | 主なトレードオフ |
|---|---|---|
| 最大限の臨床的特異性 | ホットスタートポリメラーゼ+配列特異的プローブ | 反応あたりのコストと開発努力の増大 |
| 費用対効果の高いスクリーニング | 厳格なプライマー設計、Mg²⁺とプライマーレベルの最適化、ルーチンのNTC | 融解曲線および増幅解析への依存度が高い |
| 低コピー数標的の検出 | ホットスタート化学、低く効果的なプライマー濃度、希釈による検証 | 過度なプライマー削減はシグナルを弱める可能性がある |
| マルチプレックス検出 | ペア間ダイマースクリーニング+各標的用プローブ | より複雑な最適化と蛍光管理 |
| 大量生産 | 安定した試薬組成と制御されたセットアップ条件 | 保管とワークフローの堅牢性に関する追加検証が必要な場合がある |
正しい決定は、エラーの結果に依存します。
偽陽性が不必要な治療を引き起こしたり、臨床的な信頼を損なったりする可能性がある場合、試薬コストの削減が唯一の有意義な最適化目標になることはほとんどありません。アッセイが広範なスクリーニング用に設計されている場合、その制限が理解され制御されている限り、色素ベースのシステムが依然として適切である可能性があります。
エンジニアリングとは、どの故障モードが許容可能かを選択する学問であることが多いのです。
検証はアッセイの最も弱い点に従うべきである
プライマーダイマーの制御戦略は、ストレス下でテストされるまで不完全です。
検証は、きれいな高コピー数サンプル以上のものを調べるべきです。競合や非特異的増幅を露呈させる条件を含める必要があります:
- 低コピー数の標的濃度
- ノーテンプレートコントロール
- 室温での長いセットアップ間隔
- 複数の試薬ロット
- 異なる操作者
- 計画されたプライマー濃度範囲
- マグネシウム濃度範囲
- 潜在的に干渉するサンプルマトリックス
- 現実的な標的比率でのマルチプレックスの組み合わせ
曲線の有無以上のものを追跡してください。
有用な性能指標には以下が含まれます:
- プライマー濃度間でのCtシフト
- 増幅効率
- 段階希釈全体での直線性
- 検出限界
- NTCにおける偽陽性率
- 色素ベースアッセイの融解曲線プロファイル
- 判定しきい値付近での再現性
- 非標的配列との交差反応性
プライマーダイマーの問題は、劇的な偽陽性として現れる前に、不安定性として現れることがよくあります。小さなCtシフト、反復間のばらつきの増大、または説明のつかない遅い曲線は、反応が制御を失いつつあるという初期の警告です。
特異性の経済学
すべての緩和戦略にはコストがかかります。
ホットスタートポリメラーゼは反応あたりの費用を増加させ、より長い活性化時間を必要とする場合があります。プローブベースのシステムは、追加のオリゴヌクレオチド、蛍光標識、設計作業を必要とします。より低いプライマー濃度はバックグラウンドを減らすかもしれませんが、蛍光強度を下げたり、低コピー数の検出を損なったりする可能性があります。
プライマーの再設計は、別の種類のコストを生み出す可能性があります。新しいアンプリコンは二量化を回避できるかもしれませんが、新たに出現したバリアントや劣化が進んだ臨床サンプルに対しては性能が低下する可能性があります。
正しい問いは、「どの化学が最も安いか?」ではありません。
それは:
誤った結果、繰り返しのラン、失敗した検証バッチ、または臨床医が信頼できない診断製品の総コストはいくらか?
メーカーにとって、この計算は個々の反応を超えて広がります。これには原材料の一貫性、スケールアップの挙動、技術移転、ロットリリース、そしてコンセプトから臨床まで性能を維持する能力が含まれます。
CamelBioがアッセイ開発をサポートする領域
プライマーダイマーは分子レベルの問題ですが、それを解決するには多くの場合、複数の開発段階にわたる決定が必要です。
CamelBioは、診断薬メーカー、臨床検査室、研究機関に対し、IVD原材料、技術サービス、コンサルティングへのワンストップアクセスを提供しています。このサポートは、アッセイのコンセプトから臨床実装までの道のりをカバーします。
開発チームは以下を必要とするかもしれません:
- 適切な活性プロファイルを持つホットスタート酵素の選択
- プローブベースとインターカレート色素化学の比較
- プライマー、マグネシウム、酵素濃度の最適化
- 非特異的増幅の調査
- 低コピー数性能の検証
- ロット間での試薬の一貫性向上
- 製造または臨床使用に向けたアッセイの準備
これらの決定はつながっています。ポリメラーゼの変更は最適なマグネシウム濃度を変える可能性があります。プライマー濃度の変更は検出限界をシフトさせる可能性があります。プローブ検出への切り替えは偽の蛍光を解決する一方で、新たなマルチプレックス設計要件を導入する可能性があります。
したがって、有用なパートナーとは、単に孤立したコンポーネントのサプライヤーではありません。アッセイシステム全体に適用できる、互換性のある原材料、技術知識、開発ガイダンスの源泉なのです。
最終的な展望
プライマーダイマーは小さなイベントとして始まります。2つのオリゴヌクレオチドの誤った末端で、数個の相補的な塩基が出会うだけです。
その結果は、はるかに大きなものになり得ます。
アーティファクトは試薬を消費し、Ct値を歪め、偽の蛍光を生成し、低コピー数の標的を隠蔽し、マルチプレックスパネル内でクロストークを引き起こす可能性があります。さらに重要なことに、技術的に妥当なアッセイを、臨床的に信頼できないものに変えてしまう可能性があるのです。
最も強力なqPCRアッセイは、プライマーダイマーの防止をシステムレベルの設計タスクとして扱います。それらは、慎重な配列選択、ホットスタート化学、適切な検出アーキテクチャ、最適化された反応条件、そして患者が気づく前に失敗を露呈させるコントロールを組み合わせています。
原材料、qPCR化学、アッセイ最適化、およびコンセプトから臨床までの道のりに関するサポートについては、当社の専門家にお問い合わせください。
関連製品
- WB、IF/ICC、ELISA用 Anti-PKC zeta ポリクローナル抗体 - Q05513
- フローサイトメトリー用 モノクローナル マウス IgG1 アイソタイプ コントロール抗体 (コンジュゲート) - マウス IgG 1 アイソタイプ コントロール
- meRIP、ドットブロット、ELISA、およびヌクレオチドアレイ用 N6-メチルアデノシン (m6A) ウサギポリクローナル抗体
- Anti-APITD1 ウサギ pAb - Q8N2Z9
- WB、IHC-P、IF/ICC、ELISA用抗カタラーゼポリクローナル抗体 - P04040